Fotosyntese
Transport av elektroner og protoner
- Kinoner frakter to elektroner og protoner ad gangen
- Jern som elektrontransportør i cytokromer og svovelproteiner
- Syklisk elektrontransport
- NADPH - reduksjonskraft fra ikkesyklisk elektrontransport
- pH-gradient og Q-syklus for å lage ATP
- Pseudosyklisk elektrontransport
- Produksjon av dioksygen i fotosyntesen
- Elektrontransport hos kjemofotoautotrofe bakterier
- Fotofosforylering, ATP syntase og kjemiosmotisk teori
Den fotosyntetiske lysreaksjon består av samvirke mellom elektronbærere, enzymer og pigmenter. Elektroner fraktes over et større spenn i redokspotensial i fotosyntesen hos planter, alger og blågrønnbakterier enn hos anaerobe fotoautotrofe bakterier. Fotosystem II og I henger sammen med en serie av elektronbærere i et Z-skjema forslått av Hill og medarbeidere på begynnelsen av 1960- tallet.
Elektroner overføres fra vann til ferredoksin, den første stabile redoksforbindelsen. Ferredoksin i redusert tilstand har med sitt negative potensial (-0.43 V) mulighet til å redusere NADP+.


Kinoner frakter to elektroner og protoner ad gangen
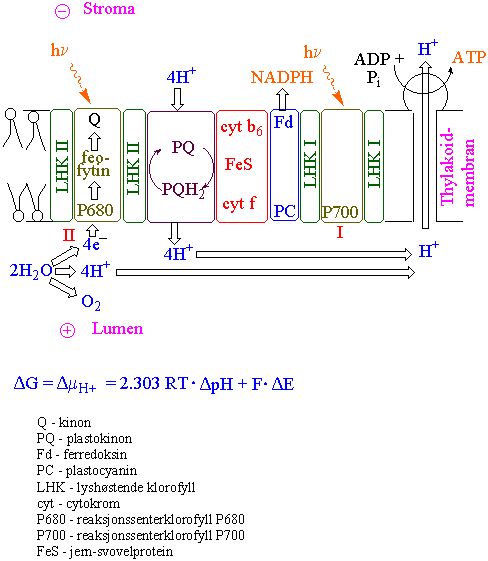
Kjernen i reaksjonssenter II utgjøres av D1/D2 proteinene med sine kinoner. Forkortelsen D har de fått fra det diffuse forløpet disse proteinene viser under gelelektroforese. Assosiert eller bundet til D1/D2 proteinene er reaksjonssenterklorofyll P680, plastokinoner, feofytin, jern (Fe2+), mangan (Mn2+), kalsium (Ca2+) og klorid (Cl-). Plastokinon QA er bundet til D2-proteinet og QB er bundet til D1-proteinet. Feofytin er et spesialisert klorofyllmolekyl som mangler Mg2+ i tetrapyrollkjernen og er bundet til D1-proteinet. Hos fotosyntetiske bakterier er den en symmetri i hvordan reaksjonssenterklorofyll, feofytin og kinoner er organisert. Elektronet går fra enelektrontransportøren QA over til toelektrontransportøren QB. Q står for kinon. Kinoner kan frakte to elektroner og to protoner ad gangen. Plastokinon inneholder et kinon og en hydrofob hale som fester det til membranen. I redusert tilstand er kinonet et hydrokinon (QH2). QB2- stabiliseres ved å binde to protoner fra stromasiden av thylakoidmembranen slik at det dannes et plastohydrokinon QBH2. QBH2 kan diffundere i membranen og avgi elektroner til Rieske jern-svovelproteiner og cytokrom b6/f-komplekset, mens to protoner blir fraktet fra stromasiden til lumen i thylakoidmembranen.
Jern som elektrontransportør i cytokromer og svovelproteiner. Kobber i plastocyanin
Transisjonsmetallene jern og kobber er viktige transportører av elektroner. Cytokrom b6f-komplekset som er likt fordelt mellom grana og stromalameller inneholder to b- hem, ett c-hem (tidligere kalt cytokrom f) og Rieske jern-svovelproteiner (navn etter Rieske som oppdaget dem). c-hem i cytokrom c er kovalent bundet til protein med en thioeterbinding til cystein, mens cytokrom b av protohemtypen er ikke kovalent bundet. Bakterier og mitokondrier inneholder et cytokrom bc1-kompleks som ligner på cytokrom b6/f kompleks. Protoner fraktes over thylakoidmembranen inn i lumen via Q-syklus. Cytokrom f frakter elektroner til et blåfarget kopperprotein kalt plastocyanin som deretter reduserer reaksjonssenterklorofyll P700 i fotosystem I. Lysenergien gir her en svak oksidant P700+.

Noen alger og blågrønnbakterier inneholder et cytokrom c istedet for plastocyanin.
Syklisk elektrontransport
Syklisk elektrontransport skjer ved at redusert P700 gir elektroner gjennom cytokrom b6/f- komplekset tilbake til P700. I dette tilfellet lages ikke oksygen og NADPH, men bare ATP.
NADPH - reduksjonskraft fra ikkesyklisk elektrontransport
NADPH er bærer av reduksjonskraft i form av elektroner og protoner. Nikotinamidringen i pyridinnukleotidet kan motta to elektroner og ett proton. NADH brukes mest for å lage ATP i oksidativ fosforylering, mens NADPH overfører 2 elektroner og 2 protoner i reduksjonen av karbondioksid.
Elektrontransportørene er plassert assymetrisk i thylakoidmembranene. NADP-ferredoksin reduktase på utsiden av ikke-sammenpresset membran. Plastocyanin ligger inn mot lumen i thylakoiden og ferredoksin mot stromasiden. Redusert ferredoksin kan overføre elektroner til NADP+ slik at det dannes NADPH + H+ katalysert av ferredoksin-NADP oksidoreduktase. Redusert ferredoksin kan også gi elektroner i en syklisk elektrontransport rundt fotosystem I katalysert av ferredoksin kinon reduktase.
pH gradient og Q-syklus for å lage ATP
Syklisk og ikkesyklisk elektrontransport gir protoner og surgjøring av lumen og det blir en pH- gradient over thylakoidmembranen, DpH. pH gradienten er imidlertid ikke så stor som man tidligere har trodd. Det lages en ladningsgradient som skyldes ladningsoverføring over membranen i en Q- syklus. Protoner blir også forbrukt ved reduksjonen av NADP+, noe som hever pH i stroma. Den elektrokjemiske potensialgradienten over thylakoidmembranen brukes til protondrevet syntese av ATP, fotofosforylering, katalysert av ATP syntase.
Pseudosyklisk elektrontransport
Mehler oppdaget i 1951 at thylakoider i lys kunne redusere oksygen. Det skjer på den reduserende siden av fotosystem I.
Molekylært oksygen kan derved reduseres direkte av fotosystem I i en reaksjon kalt pseudosyklisk elektrontransport (Mehler-reaksjon). Dette gir superoksidadnionradikalet som omsettes av enzymet superoksid dismutase. Superoksid dismutase (SOD) er metallproteiner som inneholder kobber, zink, mangan eller jern. Cu-Zn SOD finnes hos i alle eukaryote celler, inkludert kloroplastene.
Produksjon av dioksygen i fotosyntesen
Ved ladningsseparasjon lages P680+ og feofytin-. P680- reduserer feofytin (-610 mV) og overfører elektronet fra en høy potensialdonor og skaper en sterk reduktant og oksidant. Elektronet overføres raskt fra feofytin til et semikinon.
P680+ er en sterk oksidant og brukes til å oksidere vann, hvor det frigis oksygen og fire protoner i lumen i thylakoidmembranen. Fire elektroner fraktes i elektrontransportsystemet frem til fotosystem I for hvert molekyl oksygen som blir frigitt. Mn trengs i vannspaltingen.


Reaksjonen skjer i flere trinn. Fire positive ladninger skapt av P680+ må akkumuleres før et molekyl oksygen frigis. Ifølge modellen til Kok og medarbeidere. Cl- virker som motion. Mangankomplekset bundet til et manganstabiliserende protein (33kDa) gjør at OH bindingen i vann blir svakere slik at to vannmolekyler kan kobles sammen og gi dioksygen.
Redoksaktivt tyrosin-160 på D1-proteinet, kalt tyr Z, er elektrondonor til fotooksidert klorofyll. Tyr Z reduseres med elektroner som kommer fra en samling av mangankomplekser og blir til tyr Z×. Tyr Z er en rask elektrondonor som dannes sammen med frigivelse av H+. P680+ har meget sterkt oksidasjonskraft og må være fjernet ved ladningsseparasjon fra Qa- for å hindre at elektronet flyter tilbake igjen.
Tyrosin Tyr Z blir reversibelt oksidert og redusert under utviklingen av dioksygen. Når Tyr Z avgir et elektron til den sterke oksidanten P680+ avgir det samtidig et proton og blir derved et tyrosinradikal Tyr Z·. For å kunne gjendanne nøytralt Tyr Z trengs det både ett elektron og ett proton som kommer fra vann via det oksygenutviklende proteinkomplekst (OUP).
I vannspaltingsapparatet hos høyere planter inngår også proteinene PsbP (23 kDa), PSBO (33 kDa) og PsbQ (16 kDa).
I 1969 gjorde franskmannen Pierre Joliot eksperimenter med alger og kloroplaster hvor han studerte effekten på oksygenutviklingen ved å gi korte lysglimt. Joliot fant at oksygen ble utskilt i større mengder ved hvert 4. lysglimt. Nederlenderen Bessel Kok foreslo at fotosystem II lagret oksidasjonsekvivalenter ved hvert lysglimt til det ble samlet opp fire stykker som var nødvendig for å utvikle ett dioksygen fra to vannmolekyler. Dette ga opphav til en S-nivåsyklusteori med 4 S nivåer i en 4 elektron oksidasjon av vann koblet til mangankomplekset.
Elektrontransport hos kjemofotoautotrofe bakterier
Purpursvovelbakterier og purpurikkesvovelbakterier inneholder enten bakterieklorofyll a eller bakterieklorofyll b i membraner som kommer fra cytoplasmamembranen. Grønne svovelbakterier inneholder bakterieklorofyll a og enten bakterieklorofyll c, d eller e. Membranproteinkomplekset består av bakterieklorofyll, bakteriefeofytin, karotenoider, kinonmolekyler og jern. Reaksjonssenter P870- komplekset er tilstede hos purpurbakteriene, mens P840 hos grønne svovelbakterier. Syklisk elektrontransport hos fotosyntetiske bakterier gir ikke oksygen, men ATP. Elektroner fra oksiderbare substrater trengs bare for produksjon av NADH. Elektroner fra bakteriefeofytin overføres til QA som er sterkt bundet til ubikinon som beveger seg over membranen og frakter protoner. Elektroner fra ubikinon kan brukes til å redusere NAD+ via ferredoksin katalysert av ferredoksin NAD reduktase eller går tilbake til reaksjonssenteret. Elektroner kommer fra hydrogensulfid eller thiosulfat.


Purpurbakteriene bruker en annen måte for å skaffe nok energi til å redusere NAD+. Elektroner fra oksiderbare substrater overføres til ubikinon katalysert av dehydrogenaser. Elektroner fra ubikinonpoolen reduserer NAD+ gjennom energikoblet revers elektronstrøm.
Deisenhofer, Huber og Michel fra Tyskland fikk nobelprisen i kjemi 1988 for ved hjelp av røntgenkrystallografi å ha funnet strukturen i reaksjonssenteret i fotosyntesen hos en purpurbakterie.
Fotofosforylering, ATP syntase og kjemiosmotisk teori
Flyten av elektroner i elektrontransportkjeden i fotosyntesen er koblet til protontransport og syntese av ATP. P. Mitchells kjemioosmotiske teori for ATP syntese forutsetter membraner over hvilke det kan fraktes protoner. Membranvesikler har dinstinkt innside og utside som er forskjellige både funksjonelt og fysisk. Vannspaltingen skjer på den indre overflaten av thylakoidmembranen. I tillegg gir oksidasjon av plastokinon protoner i thylakoidlumen. pH gradienten er vanligvis 2 pH- enheter. Antall protoner som fraktes per elektron varierer mellom 2 og 3. Både protongradienten og ladningsforskjellen gir en protondrivende kraft.
En protondrivende kraft driver fotofosforyleringen. De første eksperimentene som antydet et slik mekanisme ble gjort av Jagendorf og medarbeidere. De hadde kloroplaster i en buffer pH 4 slik at det ble en likevekt på utsiden og innsiden med samme pH. Deretter ble kloroplastene overført til pH 8 sammen med ADP og Pi og de så at det ble dannet ATP uten at det var lys tilstede.
(Jagendorfs eksperiment).
ATP syntase - et roterende enzym
Enzymsystemet som lager ATP kalles ATP syntase og består av et hydrofilt proteinkompleks kalt CF1 som stikker ut i stroma, og en hydrofob del som ligger i membranen kalt CF0. CF1 består av fem forskjellige proteiner (a, b, g, d). Koblingsfaktoren kan slippe protoner gjennom membranen og ATP lages ved en dehydreringsreaksjon:

ATP syntesen nøytraliserer protongradienten kontinuerlig. CF1 består av 3 a og 3 b subenheter, og etter en hypotese av Paul Boyer roterer disse rundt en kamaksel (bestående av protein) bundet til CFo. Ved de konformasjonsendringene i proteinene som transporten av H+ gjennom komplekset forårsaker overføres energien til ATP.
Stoffer som utkobler ATP syntesen, men opprettholder elektrontransporten kalles avkoblere.
Boyer, P.D.: The ATP synthase - a splendid molecular machine. Ann. Rev. Biochem. 66 (1997) 717-749.