Vekst og utvikling
Meristem, celledeling og polaritet
- Apikale meristem og plantekropp
- Apikale rotmeristem
- Kimære meristemer
- Utviklingsbiologi
- Cellesyklus og kontroll av celledelingen
- Cellesyklus - DNA replikasjon og mitose
- Polaritet
Apikale meristem og plantekropp
En struktur i planten blir til ved gjentatte celledelinger utviklet som en integrert enhet. Blad, stengel, kronblad og de fleste andre planteorganer har genetisk determinert vekst og når en maksimal størrelse. Organene lages av en gruppe celler på flankene av meristemet. Bladprimordier utvikler seg i et karakterisitisk genetisk bestemt mønster kalt fyllotaksis. Plantene viser stor evne til regenerering og plantecellene er totipotente. Embryogenesen gir opphav til embryo, den rudimentære plantekroppen. Meristemer er celler som opprettholder egenskapen til embryonale celler, og de kan dele seg i lang tid etter at embryogenesen er avsluttet.
Det apikale skuddmeristemet er omgitt av unge blad og bladprimordier. Størrelse og aktivitet til skuddmeristemet varierer med årstid. Cellene i meristemet er små med tynne vegger og tett cytoplasma uten sentralvakuole. Hos blomsterplantene består skuddmeristemet av en ytre tunika med vanligvis 3 cellelag, L1-L3, med L1 ytterst. Celledelingene skjer både periklint og antiklint. Perikline celledelinger med delingsplan parallelt med organets overflate øker antall celler i et lag, mens antikline delinger med delingsplan vinkelrett på overflaten øker overflaten. Tunika ligger over de indre cellene kalt korpus. Senteret i meristemet består av en sentralsone omgitt av en perifer sone. Bladinitiering skjer i den perifere sonen. Noen celler i meristemet vil forbli udifferensierte og kalles apikale initialceller. Apikale initialceller ligner stamceller som man finner i dyr. Alle cellene i blod hos dyr kommer fra en liten polulasjon med stamceller i beinmargen. Stamcellene er få, pluripotente og deler seg sakte, i motsetning til de avledete cellene som deler seg meget raskt. Apikale initialceller deler seg tilnærmet uendelig, mens de avledete deler seg bare en begrenset antall ganger. Bregner og lavere planter har bare en apikal initialcelle som gir opphav til alle celler i planten. Hos lavere planter lager en intitalcelle to datterceller som er ulike, hvorav en er litt mindre og har ikke evnen til å dele seg uendelig. Den andre er en permanent initialcelle. I motsetning har blomsterplantene (angiospermene) flere intitalceller som viser stokastisk celledelingskinetikk. Hver intialcelle lager en populasjon av datterceller hvorav noen selekteres til neste generasjons intitialceller og resten differensieres til celler med spesifikk funksjon i plantekroppen. Det blir derved mulig å følge cellelinjer som avstammer fra en initialcelle. Skjebnen til en celle bestemmes av posisjon og lokalisering i plantekroppen og den bestemmes gradvis av eksponering for et morofogenisk stimuli. Seleksjonen av datterceller som gir intialceller synes å være tilfeldig. Det finnes en sannsynlighet for at begge datterceller til en gitt initialcelle kan miste evnen til å være stamcelle. En determinert plante med determinert meristem har bare en begrenset mengde vekst før den blomstrer og blomstringen er ofte slutten på den vegetative veksten. Eksempel er ettårige planter. Slike planter mangler permanente initialceller i meristemet. Planter med ikke-determinert vekst f.eks. eføy har et lite antall initialceller i hvert lag av meristemet.
Gjennomvoksing og andre vekstformer
Når det vegetative meristemet omformes til blomstermeristem blir vanligvis veksten bli determinert (avsluttet), men det kan skje revertering tilbake til vegetativt meristem. Eksempler på slike revertanter er gjennomvoksing, hvor det vegetative meristemet vokser tvers igjennom blomsten f.eks. hos tusenfryd (Bellis perennis) eller hos enghumleblom (Geum rivale) som blir stående igjen som en krans, og hvor det deretter dannes en ny blomsterstilk med blomstringsmeristem og blomst.
Både vanlige blad fra et vegetativt skuddmeristem og grønne begerblad fra et blomstermeristem har aktive gener for kloroplastutvikling. Fargerike kronblad fra et blomstermeristem uttrykker gener for utvikling av kromoplaster eller gener for syntese av flavonoider.
Blomkål er en mutasjon av kultivaren dyrket kål (Brassica oleraceae) som har en abnorm prolifering av meristem. Istedet for å lage blad lager hvert meristem flere meristemer på flanken slik at det blir opptil en million meristemer. Det finnes meristemspesifikke gener som bl.a. koder for histoner. Grønnsaken brokkoli er en masseformering av blomstermeristemer. Blir brokkoli stående for lenge ute på planten vil skuddet strekke seg og gi massiv blomstring.
Maismutanten knotted (Kn1) er en dominant mutant som mangler skuddmeristem, men har utvekster (knotter) på bladet. Dette gir en stor effekt på bladmorfologien med forkrøplete og fordreide blad som et resultat av abnorm celledeling langs ledningsstrengene. Knotted mutasjonen påvirker et område av maisbladet kalt ligula, en utvekst mellom overgangen bladplate og bladstilk. Kn1 genet inneholder en konservert region kalt homeoboks som finnes i gener som kontrollerer viktige hendelser i utviklingsprosesser hos eukaryoter. Homeoboksgener koder for en gruppe transkripsjonsfaktorer som kalles homeodomene proteiner.
Apikale rotmeristem
Apikale rotmeristem er dekket av en rothette som lages av meristemet. Rothetta beskytter meristemet på veien ned i jorda, slites av, og er ikke en permanent del av rota. Rothetta inneholder statolitter som registrerer retningen for tyngdekraften og produserer karbohydratslim som gjøre at rota glir lettere gjennom jorda. Organiske stoffer som skilles ut fra jorda gir en rik mikroflora og mikrofauna rundt røttene. Et rolig senter er en sentralt plassert del av meristemet hvor cellene deler seg med en mye lenger tidssyklus. Hvis f.eks. cellecyklus varer i 400 timer i rolig senter, mens celledelingen (doblingstiden) tar bare 10 timer i rothetta betyr dette at en rothettecelle har delt seg 40 ganger og produsert 1.1 x 10¹² celler, mens en celle i rolig senter bare er ferdig med en celledeling. Med radioaktiv tritium- merket thymidin vil celler som har DNA replikasjon og aktiv deling inkorporere radioaktiv thymin i kjernen. Ved mikroautoradiografi vil filmen bli svertet der hvor det er aktiv celledeling, mens den er blank i rolig senter.
Kimære meristemer
Kimærer er monstere fra gresk mytologi med kropp til geit, hale til en drage og hode til en løve. Et kimært meristem består av lag eller sektorer av celler med forskjellig genetisk sammensetning. Kimærer kan lages på forskjellig måte og er viktige i studiet av cellelinjer:
- 1) Ioniserende stråling eller røntgenstråling som induserer mutasjon i noen men ikke alle cellene i meristemet.
- 2) Colchicin kan brukes til å lage polyploide celler for de cellene som akkurat deler seg under colchicin-behandlingen.
- 3) Meristempoding.
Variegasjoner i eføy og geranium med sektorer med hvite og grønne områder lages av muterte celler som har mistet evnen til å utvikle kloroplaster. Det hvite eller gulhvite vevet kommer fra en eller flere spesielle celler i meristemet
Det finnes to hovedtyper kimærer:
- 1) Perikline kimærer som skyldes at det apikale meristem hos angiospermene er satt sammen av konsentriske ringer (lag L1-L3). Perikline kimærer gir en mosaikk hvor den genetiske sammensetning av et eller flere av meristemlagene skiller seg fra de andre f.eks. bergflette (Hedera helix).
- 2) Sektorkimærer omfatter flere av cellelagene L1-L3.
Utviklingsbiologi
Den kuleformede grønnalgen Volvox er en svært enkel flercellet organisme. Den består av et ytre lag av opptil 4000 somatiske celler med to flageller som holdes sammen i et glykoproteinmatriks. Cellene ligner på den encellete grønnalgen Chlamydomonas. Innenfor den kuleformete overflaten er det opptil 16 større reproduktive celler kalt gonidier. Hver gonidium kan ved gjentatte celledelinger danne en ny Volvox-koloni som slippes ut fra foreldrekolonien som deretter dør. Hva er det som bestemmer om en celle skal bli somatisk celle eller et gonidium ? Glykoproteinmatrikset inneholder feromoner som bl.a. omdanner aseksuelle celler til hann- og hunn-celler som brukes i seksuell reproduksjon.
Det finnes mutanter hos vårskrinneblom (Arabidopsis thaliana) som påvirker forskjellige sektorer langs lengdeaksen av plantekroppen, fra apikal til basal ende. Fenotypen av basalmutanten monopterous (mp) mangler hypokotyle og rotmeristem. Fenotypen av fäckel (fk) mangler hypokotyle og mutanten gurke (gk) som påvirker den apikale delen danner ikke skuddmeristem og frøblad.
Celledeling, vekst og polaritet
Vekst kan defineres som irreversibel økning i cellevolum, men også som økning i antall celler. Under embryogenesen minsker cellestørrelsen. Celler øker ikke bare i størrelse, men også i lengde slik at det må finnes en polaritet. Både auxin og gibberellin kan gi økning i cellestørrelse og spesielt gibberellin er viktig for strekning av planter. Lys er en ytre faktor som påvirker strekning.
Cellesyklus og kontroll av celledelingen
Sekvensen G1 (forberedelse til DNA replikasjon) - S (syntese, DNA-replikasjon) - G2 (forberedelse til mitose) - M (mitose) kalles cellesyklus. En gruppe proteiner kalt cycliner
starter cellesyklus og initierer mitosen. Mengden cykliner forandrer seg betydelig gjennom syklus fra nær null tidlig i G1 til en topp ved starten av mitosen, for deretter å falle tilbake til null seinere i mitosen. Genene som koder for cykliner har blitt klonet og de er konserverte. I planter behøver nødvendigvis ikke mitosen etterfølge replikasjonen av kromosomer, selv om det vanligvis skjer i meristematiske celler. Celler som forlater G2 vil bli tetraploide. Celler i bladmesofyll kan ofte være tetraploide. Polyploidi oppstår fordi cellene går igjennom G1-S- G2 flere ganger uten å gå inn i mitosen. Tre prosesser i celledelingen spiller en viktig rolle i plantenes utvikling:
- 1) Start av organdannelse fra celledelinger i et meristem.
- 2) Celledelingsplanet bestemmer formen på et planteorgan.
- 3) Start av celledifferensiering.
I mosetning til røtter har stengelvev liten vekst når stengelbiter dyrkes kunstig i et enkelt kulturmedium. Det er først når det dannes adeventivrøtter på stengelbitene at veksten tiltar. Det må være en rotavledet faktor som regulerer vekst av skuddet. Auxin og cytokin deltar i cellesyklus hvor auxin regulerer hendelser tilknyttet DNA replikasjonen og cytokinin regulerer hendelser tilknyttet mitosen. Krongalle på planter forårsaket av bakterien Agrobacterium tumefasciens er et eksempel på en form for kallusvekst styrt av auxin og cytokinin. Cytokininer må ikke forveksles med cytokiner fra immunsystemet hos vertebrater.
Dannelse av lukkecellene i spalteåpningene i epidermis er et eksempel på ulik celledeling hvor den mitotiske spindel ikke er sentrert i cellen og de to dattercellene får forskjellig størrelse. Lukkecellene har i tillegg kloroplaster, noe de andre cellene i epidermis ikke har. Utvikling av rothår er et annet eksempel på ulik celledeling.
Cellesyklus - DNA replikasjon og mitose
I 2001 fikk Leland Hartwell, Tim Hunt og Paul Nurse nobelprisen i fyiologi og medisin for banebrytende studier av reguleringen av cellesyklus. Det startet på 1970-tallet med bruk av enkle modellorganismer. Selv om ikke alle studiene er gjort på planteceller er det svært mange likhetspunkter i cellesyklus hos alle eukaryoter. Cellesyklus består av 4 faser:
- M - Mitose hvor kromosomene kondenseres og atskilles og det skjer en celledeling (cytokinese).
- S - Syntese av DNA og replikasjon av kjerne-DNA. Mengden DNA dobles i S-fasen og halverrres i mitosen.
- G1 - Gap som atskiller M og S. Kromosomene er diffuse og det er ingen tydelig struktur i kjernen. Cellen gjør forberedelser til DNA-replikasjon.
- G2 - Gap mellom S og M hvor cellen forbereder seg til mitose og celledeling.

Celler som deler seg må igjennom syklusen G1-S-G2-M for å kunne gi to datterceller. Hos planter lages det en celleplate mellom de to nye cellekjernene før de atskilles med en cellevegg. Hartwell brukte vanlig knoppskytende bakegjær (Saccharomyces cerevisiae) til sine studier og identifiserte gener som kodet for delingen av disse eukaryote cellene. Nurse brukte fisjonsgjæren Schizosaccharomyces pombe. Det ble isolert cdc celledelingsmutanter (cdc - “cell division control”). Celledelingen ble med forskjellige metoder synkronisert og med disse metodene kunne de vise at mange proteiner deltar i cellesyklus i en dynamisk opp- og nedbygging ved kontrollpunkter. Protein kinaser og fosfataser deltar i styringen av celledlingen. Cykliner er proteiner som lages og brytes ned under cellesyklus. Det finnes både G1-cykliner, S-cykliner og M-cykliner og cyklinavhengige kinaser (CDK - “cyklin dependent kinase”). Aktiviteten til de cyklinavhengige kinasene er under streng reguleringskontroll. CDK finnes i både aktive og inaktive former avhengig av hvilke av aminosyrene threonin eller tyrosin på enzymet som er fosforylert. Reguleringen kan også skje ved separate inhibitorer (CDI) (“cyklin dependent kinase inhibitor”). Abscisinsyre kan bl.a. indusere syntese av CDI. CDK er konserverte proteiner gjennom evolusjonen og de har bindingssete for ATP i den N-terminale enden. De har også et PSTAIRE-domene som kan binde cykliner. CDK1 bestemmer om celler skal gå fra G2 til M. CDK 2 og CDK3 avgjør om cellene skal gå fra G1 til S, og CDK4 og CDK 6 i G1 bestemmer om det skal bli en ny syklus eller ikke. Hunt arbeidet med oocytter i sjøpinnsvin og fant at mitoseforberedende faktorer (MPF - “mitosis promoting factor”) var nødvendige for å få cellene inn i mitosen. Økningen i MPF fulgte økning i cykliner. Mengden cykliner i sjøpinnsvinegg øker og minker periodisk gjennom cellesyklus. Starten på DNA-replikasjonen må være nøyaktig bestemt og skje bare en gang i løpet av cellesyklus. Celler i S-fase inneholder en aktivator som får kjerner i G1- fase til å gå inn i S, og en repressor hemmer DNA-replikasjonen før cellene går inn i M. Kontrollpunktene i cellesyklus hindrer at celler som har hatt feil ved dupliseringen av kromosomer går inn i mitose. Kontrollpunktene finnes både i og før S-fase og i G2. I G1 bestemmes det om cellene skal gå inn i en ny cellesyklus. Hvis det skulle skje en mitose i G1 vil dette gi tap av kromosom (aneuploidi). MCM-proteiner (MCM -“minichromosome maintenance) er nødvendige for replikasjonen og finnes i kjernen i G1-fase, men i cytoplasma i S og G2. MCM-proteiner og cdc - proteiner (cdc-“cell division control”) danner et kompleks som gir cellen lisens til å starte DNA-replikasjon. Det finnes 6 forskjellige MCM-proteiner hos eukaryoter. Disse har en konservert sekvens på 210 aminosyrer med likheter til en DNA- avhengig ATPase. For å øke hastigheten på DNA-replikasjonen starter replikasjonen på mange steder langs kromosomene.


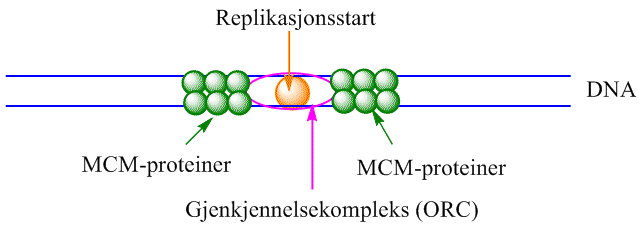
Starten på hver av replikasjonspunktene merkes med et gjenkjennelseskompleks med proteiner (ORC -“origin recognition complex”) inkludert MCM-proteiner. Replikasjonspunktene kan gjenkjennes som replikasjonsbobler langs DNA- heliksen.
I profase i mitosen er kromosomene tykke og består av 2 kromatider. Både kjernemembranen, nukleolus og preprofasebåndet forsvinner og det begynner å dannes en spindel fra pol til pol i cellen. Topoisomeraser lager supertvinning av DNA og kromosomene kan observeres i et lysmikroskop. I metafase samles alle kromosomene i cellens ekvator, og celledelingen kan ikke fortsettes før alle kromosomene ligger i ett plan. Kinetochore mikrotubuli binder seg til centromerene på kromosomene og det går polare mikrotubuli til de to polene i cellen. Kondensiner og kohesiner er proteiner som lages i S-fase og pakker DNA og kromatin slik at det blir mulig å trekke dem gjennom cytoplasma uten at DNA ødelegges. Anafaseforberedene kompleks (APC - “anaphase promoting complex”) er et stort proteinkompleks som gjør at søsterkromatidene kan atskilles i anafase. Protein som holder kromatidene sammen nedbrytes og det samme gjør M-fase cykliner. Proteiner som har utspilt sin rolle i cellesyklus og skal nedbrytes blir merket ved å binde dem til ubiquitin. Ubiquitinmerkete proteiner gjenkjennes av 26S proteasomer går til videre nedbrytning. Overgangen fra metafase til anafase skjer via fosforylering av APC styrt av cyklinavhengig protein kinase (CDC5) som virker som en biokjemisk bryter. I telofase omgis kromatidene av kjernemembraner. Kinetochore mikrotubuli forsvinner, kromosomene dekondenseres og oppbyggingen av celleplaten påbegynnes. Ved cytokinesen er det to datterceller atskilt av en ny cellevegg, men hvor cellene står i kontakt med hverandre gjennom primære plasmodesmata. Cellekjernen er omgitt av en fullstendig kjernemembran og nukleolus gjendannes. Plantehormonene auxin og cytokinin gir økt mengde G1-cykliner. Cytokinin kan få celler til å gå inn i mitose ved å aktivere en fosfatase som fjerner fosfat fra tyrosin og gjør at en cyklinavhengig protein kinase (CDK) igjen blir aktiv. Abscisinsyre kan hemme CDK. Polyploidi er vanlig i planteceller og oppstår hvis cellen hopper over M-fase og gjennomgår cellesyklus flere ganger før den endelige celledelingen. Polyploidi er korrelert med alderen til cellevevet og i eldre celler i en plante er polyploidi mer utbredt enn i unge celler. Polyploidi i de reproduktive strukturer kan gi raskere genevolusjon og artsdannelse med økt tilpasning. Det er ikke bare i cellekjernen hvor det skjer DNA replikasjon. Organelle DNA i plastider og mitokondrier blir også replikert. Det kan finnes fra 20-100 kopier med mitokondrie DNA (mtDNA) i et mitokondrium og fra 50-150 kopier med kloroplast DNA (cp-DNA) per plastide.
I meristemene i planter er det gener som styrer dannelsen av organprimorder, celledelinger i organer og opprettholdelse av meristemaktivitet. Genet SHOOT MERISTEM-LESS i Arabidopsis er med å opprettholder sentralsonen i meristemet. Genet CLAVATA deltar i dannelsen av organprimordier i meristemet i Arabidopsis, og gir økt vekst siden cellene ikke differensieres. Mutasjon i CLAVATA gir ekstremt store meristemer og økt antall organdannelser. Genet PHANTASTICA hos Antirrhinum gjør at bladene blir nålformet.
Fra gjærceller er det kjent at skader på DNA kan aktivere RAD gener. RAD proteiner kan f.eks. gi beskyttelse mot radioaktiv stråling. RAD3 er en DNA-avhengig protein kinase som aktiveres ved binding av enkelttrådet DNA, og som videre aktiverer en kontrollpunkt kinase chk1 (“check point kinase”) som kan stoppe cellesyklus ved å hemme en cyklinavhenig protein kinase. ATM (Ataxia Telangiectasia mutasjon) hos mennesker er en homolog til RAD3, og hvis det skjer en mutasjon i genet som lager dette proteinet gir dette økt kreftfrekvens. Hos pattedyr er det retinoblastomproteiner (Rb-proteiner) som styrer overgangen fra G1 til S. Rb-proteinene må fosforyleres for å være aktiv og ved fosforyleringen fjernes transkripsjonsfaktoren E2F fra Rb-proteinet. Mutasjoner i genet som lager Rb-proteinet kan gi økt mulighet for kreft
Polaritet
Celler har polaritet. Auxin transporteres basipetalt i en plante. En gradient i konsentrasjonen av Ca2+ kan være med å bestemme polaritet. Statocyter er celler som responderer på gravitasjonskreftene. Statocytene har en polaritet hvor mikrotubuli i cytoskjelettet sørger for at endoplasmatisk retikulum er asymmetrisk fordelt i cellene. Amyloplaster sedimenterer i et gravitasjonsfelt og gir et signal til statocytene når de presser seg mot endoplasmatisk retikulum. Plasseringen av cellekjernen bestemmes av mikrotubuli og mikrofilamenter i cytoskjellettet, spesielt i celler som skal inn i deling. Dette er lettest å se i celler med store vakuoler hvor kjernen beveger seg fra periferien til sentrum av cellen før deling. Andre organeller som f.eks. plastidene kan også flyttes rundt i cellene styrt av cytoskjelettet. Plassering av kjernen og andre organeller er spesielt viktig ved ulik celledeling. Sortering og atskillelse av cellekomponenter i en polar ulik celledeling gjøres av cytoskjelettet. Generative celler fra planter, unntatt noen gymnospermer mangler plastider slik at plastidene nedarves maternalt via moren. Den første delingen av den hannlige mikrosporen er ulik. Kjernen beveger seg til den ene enden av cellen og plastidene avskjæres fra dattercellen som blir den generative cellen. Både migrasjon av kjernen og fordeling av plastidene i mikrosporen som deler seg er avhengig av et system av mikrotubuli som stråler ut fra kjernen.